酵素がやっていることは1つだけ——活性化エネルギーを下げることである。平衡は動かさない。反応が速くなるだけで、どちらへ傾くかは変わらない。
その上で問われるのは「どの反応を触媒するか」による分類と、「どこまで基質を選ぶか」という特異性の2つである。どちらも暗記ではなく手順で解ける。反応式に何が入っているかを順に確かめれば、7つのクラスのどれかに必ず落ちる。
- 7つのクラス — 反応式のどこを見るか
- 補因子・補酵素・補欠分子族 — 3語の切り分け
- 系統名の読み方と、反応の型から補酵素を当てる表
- 特異性 — 絶対・相対・立体、そして exo と endo
- アミラーゼの機構 — 2つの残基が役割を分ける
- 温度と pH — 非特異的な調節
7つのクラス — 反応式のどこを見るか
国際生化学連合が1961年に定めた分類。2018年8月に EC 7(トランスロカーゼ)が追加されたので、古い教科書は6クラスと書いている。
| クラス | 反応 | 一般形 | 慣用名 |
|---|---|---|---|
| EC 1 酸化還元酵素 | H・O・電子を供与体から受容体へ | AH + B → A + BH | dehydrogenase, oxidase |
| EC 2 転移酵素 | 官能基(メチル・アシル・アミノ・リン酸)を移す | AB + C → A + BC | transaminase, kinase |
| EC 3 加水分解酵素 | 水で切って2つにする | AB + H₂O → AOH + BH | lipase, amylase, peptidase |
| EC 4 リアーゼ | 非加水分解的に付加・除去。C-C, C-N, C-O, C-S を切る | RCOCOOH → RCOH + CO₂ | decarboxylase, aldolase |
| EC 5 異性化酵素 | 分子内の組み替え | ABC → BCA | isomerase, mutase |
| EC 6 リガーゼ | ATP を分解しながら2分子を繋ぐ | X + Y + ATP → XY + ADP + Pi | synthetase |
| EC 7 トランスロカーゼ | 膜を越えてイオン・分子を動かす | — | transporter |
EC 番号は a.b.c.d の4桁(クラス・サブクラス・サブサブクラス・基質)だが、問われるのは第1桁だけである。
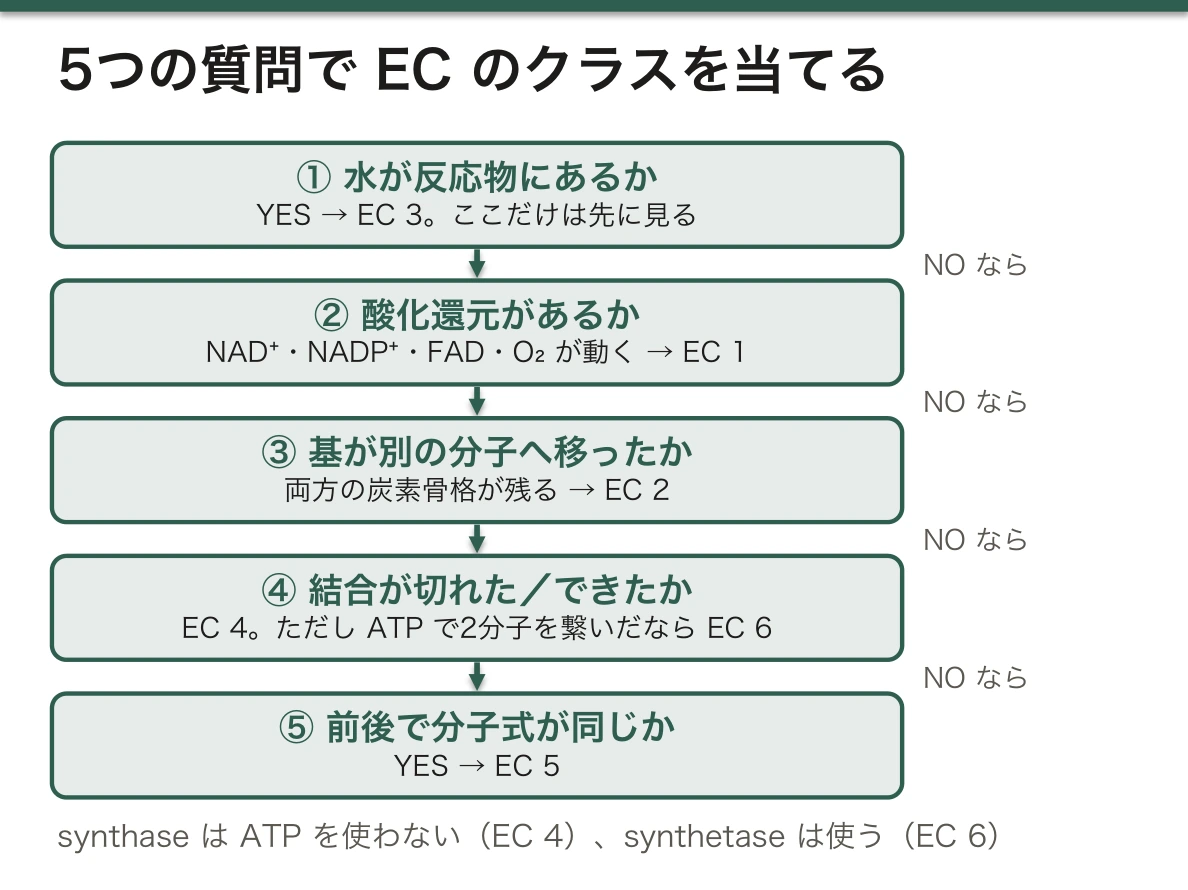
判定は5つの質問を上から順に当てるだけでよい。
- ① 水が反応物として式に入っているか → YES なら EC 3。ここだけは先に見る
- ② 酸化還元が起きているか(NAD⁺・NADP⁺・FAD・O₂ が動く、H が2個抜ける)→ EC 1
- ③ 基が別の分子へ移ったか(両方の炭素骨格が残る)→ EC 2
- ④ 水も酸化還元も無しに結合が切れた/できたか → EC 4。ただし ATP を使って2分子を繋いだなら EC 6
- ⑤ 前後で分子式が同じか → EC 5
⚠️ EC 4 と EC 6 を分けるのは、式に ATP があるかどうかだけである。名前も紛らわしい——synthase は ATP を使わない(EC 4)、synthetase は使う(EC 6)。1文字しか違わないので、綴りで判断せず式を見る。
慣用名の語尾は強い手がかりになる:-dehydrogenase / -oxidase → EC 1、-kinase / -transaminase → EC 2、-ase だけ(lipase, amylase, peptidase)→ EC 3、-decarboxylase / -aldolase → EC 4、-isomerase / -mutase → EC 5、-synthetase → EC 6。
臨床で測る酵素は、ほぼ EC 1 と EC 2 と EC 3 に集まっている。
- EC 1 — 乳酸脱水素酵素(LDH)。どの組織にもあるので特異性が低く、アイソザイムの型で臓器を推定する
- EC 2 — AST・ALT(アミノ基転移酵素)、クレアチンキナーゼ(CK)。AST/ALT はどちらも補酵素にピリドキサールリン酸(ビタミン B₆)を使う
- EC 3 — アミラーゼ・リパーゼ(急性膵炎)、ALP・γ-GTP(胆汁うっ滞)
名前の語尾を見れば、その酵素が何をしているかが分かる——ALT は「アラニンからアミノ基を移す」という反応そのものが名前になっている。肝細胞が壊れたときに血中に出てくるのは、細胞の中に高濃度で存在していたからであって、酵素が血中で働くからではない。
補因子・補酵素・補欠分子族 — 3語の切り分け
いずれも酵素が活性を持つために要るタンパク質以外の部分だが、分ける基準が途中で変わるので混乱しやすい。
- 補因子 cofactor — 総称。無機イオン(Fe²⁺・Mg²⁺・Mn²⁺・Zn²⁺)または複雑な有機・金属有機分子
- 補酵素 coenzyme — そのうち有機・金属有機分子だけ。無機イオンは含まない。官能基の運び屋として働き、多くはビタミン由来
- 補欠分子族 prosthetic group — 補酵素でも無機イオンでもよく、共有結合などで強く結合しているもの
⚠️ 上の2つは「何であるか」で分け、3つ目だけ「どれだけ強く結合しているか」で分ける。ここが引っかけどころである。
アポ酵素(タンパク質部分だけ・不活性)+ 補因子 = ホロ酵素(完全な活性型)。apo は「離れている」、holo は「全部そろった」。
補酵素はほぼそのままビタミンの一覧になる。だからビタミン欠乏症は「その補酵素を使う酵素が止まる病気」として理解できる。
| 補酵素 | 由来ビタミン | 運ぶもの |
|---|---|---|
| NAD⁺ / NADP⁺ | ナイアシン(B₃) | 水素(2電子) |
| FAD / FMN | リボフラビン(B₂) | 水素 |
| TPP | チアミン(B₁) | アルデヒド基(脱炭酸) |
| ピリドキサールリン酸(PLP) | ピリドキシン(B₆) | アミノ基 |
| 補酵素A | パントテン酸 | アシル基 |
| ビオチン | ビオチン | CO₂(カルボキシラーゼ) |
| THF | 葉酸 | 一炭素単位 |
補欠分子族の代表はヘム——ヘモグロビン・ミオグロビン・カタラーゼ・シトクロム P450 に強く結合して離れない。一方 NAD⁺ は反応ごとに出入りするので補酵素であって補欠分子族ではない。ただしコハク酸脱水素酵素の FAD は共有結合しており、これは補欠分子族である。
「補因子が無い」だけで酵素は止まる。だから欠乏症は酵素欠損症と同じ形の症状を出す。
- ビタミン B₁ 欠乏 — ピルビン酸脱水素酵素と α-ケトグルタル酸脱水素酵素が止まる → 脚気・Wernicke 脳症。乳酸が溜まる
- ビタミン B₆ 欠乏 — アミノ基転移が止まる。イソニアジドが PLP を消費するので、結核治療中は B₆ を併用する
- 亜鉛欠乏 — 亜鉛は多数の酵素の活性中心にあるので、味覚障害・創傷治癒遅延・皮膚炎と多彩に出る
逆に、補因子を奪うことが治療になる場合もある——重金属中毒のキレート剤は金属イオンを取り去ることで毒性を止めている。
系統名の読み方と、反応の型から補酵素を当てる表
酵素には慣用名(乳酸脱水素酵素)と系統名がある。系統名は「基質:受容体+反応の型+ase」の形で、反応式そのものを名前にしている。乳酸脱水素酵素の系統名は L-lactate:NAD⁺ oxidoreductase——L-乳酸から NAD⁺ へ水素を渡す酸化還元酵素、と読める。アラニンアミノ基転移酵素(ALT)は L-alanine:2-oxoglutarate aminotransferase である。
反応の型を表す言葉が分かれば、必要な補酵素(とビタミン)はほぼ決まる。
| 反応の型 | 何が起きるか | 補酵素(ビタミン) | 例 |
|---|---|---|---|
| 脱水素(酸化) | H を2つ取る | NAD⁺(B3)・FAD(B2) | 乳酸脱水素酵素・コハク酸脱水素酵素 |
| 水素化(還元) | H を2つ付ける | NADPH(B3) | HMG-CoA 還元酵素・脂肪酸合成 |
| アセチル化 | アセチル基を移す | CoA(パントテン酸) | クエン酸合成酵素・コリンアセチル転移酵素 |
| 酸化的脱炭酸(α-ケト酸) | CO₂ を外して酸化 | TPP(B1)・リポ酸・CoA・FAD・NAD⁺ | PDH・α-KGDH |
| アミノ酸の脱炭酸 | CO₂ を外してアミンにする | PLP(B6) | ドパ脱炭酸酵素・グルタミン酸脱炭酸酵素 |
| アミノ基転移 | アミノ基とケト基を交換 | PLP(B6) | AST・ALT |
| 脱アミノ | アミノ基を NH₃ として外す | NAD(P)⁺(酸化的。グルタミン酸脱水素酵素) | グルタミン酸脱水素酵素 |
| カルボキシル化 | CO₂ を付ける | ビオチン(Glu の γ-カルボキシル化はビタミン K) | ピルビン酸カルボキシラーゼ・アセチル CoA カルボキシラーゼ |
| メチル化・一炭素単位 | メチル基などを移す | SAM(Met から)・THF(葉酸)・メチルコバラミン(B12) | メチオニン合成酵素・チミジル酸合成酵素 |
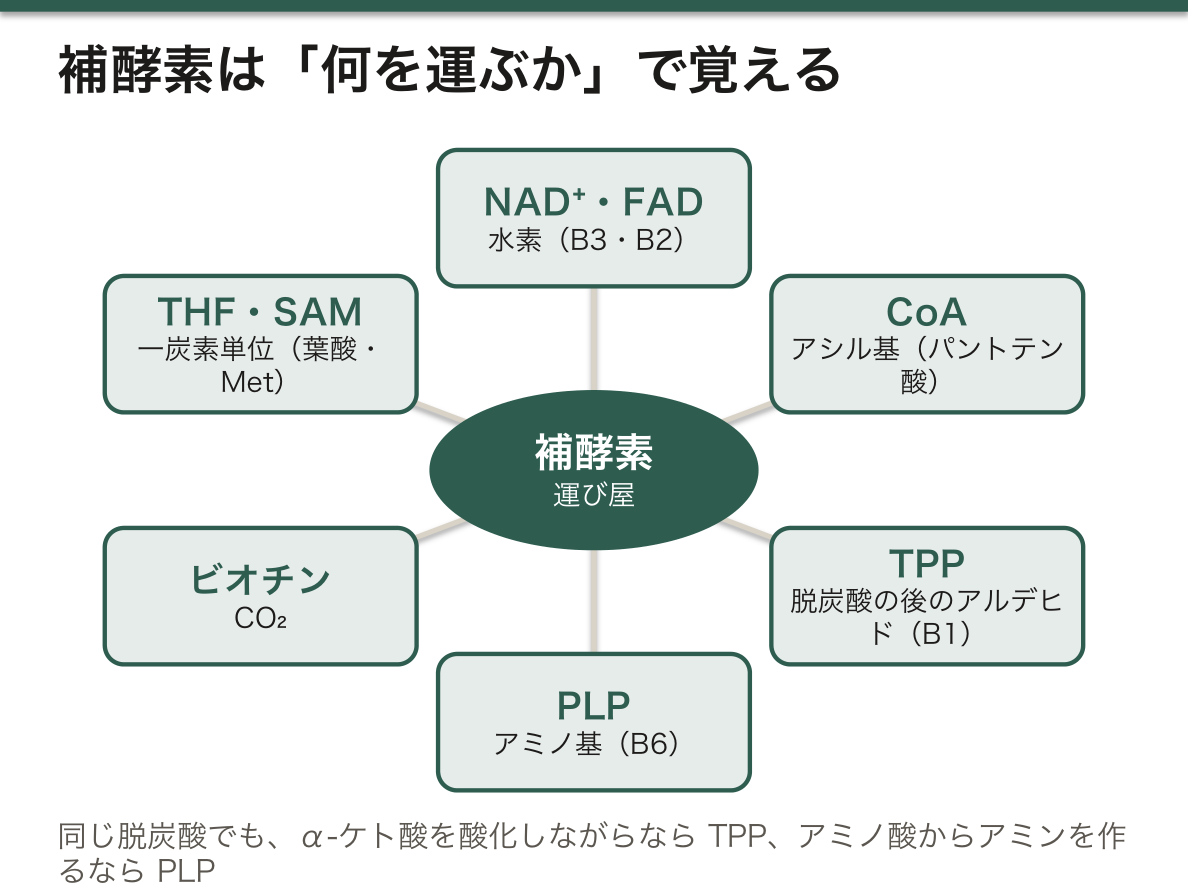
表は「運び屋が何を運ぶか」で覚えるとまとまる。NAD⁺/FAD は水素、CoA はアシル基、TPP はアルデヒド(脱炭酸の後の炭素)、PLP はアミノ基、ビオチンは CO₂、THF と SAM は一炭素単位、という対応である。同じ「脱炭酸」でも、α-ケト酸を酸化しながら外すなら TPP、アミノ酸からアミンを作るなら PLP、と相手の分子で補酵素が変わる点だけ注意する。
酵素のクラスと反応の型は1対1ではない。アミノ基転移とアセチル化は転移酵素(EC 2)、脱水素・水素化・酸化的脱炭酸は酸化還元酵素(EC 1)、アミノ酸の単純な脱炭酸は脱離酵素(EC 4)、ATP を使うカルボキシル化は合成酵素(EC 6)になる。
この表は、ビタミン欠乏がどこで代謝を止めるかの表でもある。B6 が足りないと、アミノ基転移と GABA・セロトニン・ドパミンなどの神経伝達物質の合成(脱炭酸)が同時に落ち、けいれんや末梢神経障害が出る。B1 では酸化的脱炭酸が止まって乳酸が溜まり、ビオチン欠乏(生卵白の大量摂取など)ではカルボキシル化が止まって代謝性アシドーシスと皮膚炎が出る。
English version
Core
Enzymes have a common name (lactate dehydrogenase) and a systematic name of the form ‘substrate:acceptor + reaction type + ase’, which spells out the reaction. Lactate dehydrogenase is L-lactate:NAD⁺ oxidoreductase — an oxidoreductase passing hydrogen from L-lactate to NAD⁺. ALT is L-alanine:2-oxoglutarate aminotransferase.
Know the reaction-type word and the coenzyme (and vitamin) almost follows.
| Reaction type | What happens | Coenzyme (vitamin) | Examples |
|---|---|---|---|
| Dehydrogenation (oxidation) | Remove 2 H | NAD⁺ (B3), FAD (B2) | Lactate dehydrogenase, succinate dehydrogenase |
| Hydrogenation (reduction) | Add 2 H | NADPH (B3) | HMG-CoA reductase, fatty acid synthesis |
| Acetylation | Transfer an acetyl group | CoA (pantothenate) | Citrate synthase, choline acetyltransferase |
| Oxidative decarboxylation (α-keto acids) | Remove CO₂ and oxidise | TPP (B1), lipoate, CoA, FAD, NAD⁺ | PDH, α-KGDH |
| Amino acid decarboxylation | Remove CO₂ to make an amine | PLP (B6) | DOPA decarboxylase, glutamate decarboxylase |
| Transamination | Swap amino and keto groups | PLP (B6) | AST, ALT |
| Deamination | Remove the amino group as NH₃ | NAD(P)⁺ (oxidative; glutamate dehydrogenase) | Glutamate dehydrogenase |
| Carboxylation | Add CO₂ | Biotin (vitamin K for γ-carboxylation of Glu) | Pyruvate carboxylase, acetyl-CoA carboxylase |
| Methylation / one-carbon | Transfer a methyl or other one-carbon unit | SAM (from Met), THF (folate), methylcobalamin (B12) | Methionine synthase, thymidylate synthase |
Going further
Learn the table as ‘what each carrier carries’: NAD⁺/FAD carry hydrogen, CoA acyl groups, TPP an aldehyde (the carbon left after decarboxylation), PLP amino groups, biotin CO₂, THF and SAM one-carbon units. Note that ‘decarboxylation’ needs TPP when an α-keto acid is oxidised, but PLP when an amino acid becomes an amine.
Enzyme class and reaction type are not one-to-one. Transamination and acetylation are transferases (EC 2); dehydrogenation, hydrogenation and oxidative decarboxylation are oxidoreductases (EC 1); simple amino acid decarboxylation is a lyase (EC 4); ATP-using carboxylation is a ligase (EC 6).
In the clinic
The table is also a map of where vitamin deficiencies stop metabolism. Low B6 cuts transamination and the synthesis (decarboxylation) of neurotransmitters such as GABA, serotonin and dopamine, giving seizures and neuropathy. Low B1 stops oxidative decarboxylation and lactate accumulates; biotin deficiency (e.g. eating much raw egg white) stops carboxylation, with metabolic acidosis and dermatitis.
特異性 — 絶対・相対・立体、そして exo と endo
酵素がどこまで基質を選ぶかには段階がある。
- 絶対特異性 absolute — 基質が1つだけ。例:ウレアーゼ(尿素のみ)
- 相対特異性 relative — 基質が2つ以上。さらに2つに分かれる
- 結合特異性 bond — 結合の型を認識し、分子の残りは問わない。例:膵リパーゼは脂肪酸の鎖長に関係なくエステル結合を切る
- 基特異性 group — 結合の隣に特定の官能基が要る。例:トリプシンは塩基性アミノ酸(Arg・Lys・His)の後ろでしか切らない
- 立体特異性 stereospecificity — 光学異性体・幾何異性体を区別する。例:セルラーゼは β(1→4) を切るが α(1→4) は切らない
もう1つ、同じ結合でも分子のどこにあるかで担当が違う——exo-ヒドロラーゼは外側(末端)の結合だけ、endo-ヒドロラーゼは内側の結合だけを切る。
特異性は活性部位の立体的な形から来る。だから3次元の適合であって、組成が同じだけでは足りない。
ここで「鍵と鍵穴(Fischer 1894)」では説明できない問題が出る——基質と完全に相補的な酵素は、基質を安定化するだけで反応を妨げてしまう。基質が反応するには遷移状態まで変形しなければならないのに、ぴったりはまっていると変形できないからである。
⭐ 正しくは、酵素は「基質」ではなく「遷移状態」に相補的でなければならない(Pauling 1951)。そこから誘導適合 induced fit(Koshland 1958)が出てくる——基質が結合すると酵素自身の構造が変わり、触媒に必要な基が正しい位置に来る。
活性化エネルギーを下げるエネルギーの大半は、弱い非共有結合から来る。働いているのはタンパク質の三次構造を保つのと同じ力——水素結合・疎水性相互作用・イオン結合。酵素基質複合体で弱い相互作用が1つできるたびに、少しずつ自由エネルギーが放出される。
立体特異性は、薬の効き方をそのまま決めている。
- ヒトがセルロースを消化できないのは β(1→4) を切る酵素を持たないからである。デンプンの α(1→4) は切れる。この1文字の違いが食物繊維という概念を作っている
- 光学異性体で作用が違う薬——サリドマイドの悲劇はここに由来する。ただし体内でラセミ化するため、片方だけ投与しても防げなかった
- D-アミノ酸は細菌の細胞壁にあり、ヒトの酵素は扱えない。だからペプチドグリカン合成を狙う β-ラクタム薬はヒトに毒性が低い——選択毒性の本質が酵素の特異性である
アミラーゼの機構 — 2つの残基が役割を分ける
基質はデンプン(アミロース)で、切るのは α(1→4) グリコシド結合。活性部位に収まるには最低4グルコース単位の長さが要る。
触媒残基はアスパラギン酸とグルタミン酸——どちらも酸性アミノ酸で、側鎖に余分なカルボキシ基を持つ(側鎖の炭素はグルタミン酸が3、アスパラギン酸が2)。
⭐ 活性部位の中では、アスパラギン酸は脱プロトン化(−COO⁻)、グルタミン酸はプロトン化(−COOH)している。この非対称が機構のすべてである——アスパラギン酸が求核剤、グルタミン酸がプロトン供与体として働く。
- アスパラギン酸のカルボキシラートが、分極したアノマー炭素を求核攻撃する(アノマー炭素は酸素2つに挟まれて部分正電荷を帯びている)→ グリコシド結合が切れ、糖が一過性の共有結合で酵素に繋がる
- 生じた O⁻ がグルタミン酸から H⁺ を奪って −OH になる
- 左半分が離れる。グルタミン酸は水から H⁺ を受け取って元に戻り、OH⁻ が生じる
- その OH⁻ がアノマー炭素を攻撃し、アスパラギン酸との結合が切れる
- 残りも離れ、酵素は消費されずに次の反応へ
結局、水が1分子使われている——だから加水分解酵素(EC 3)である。
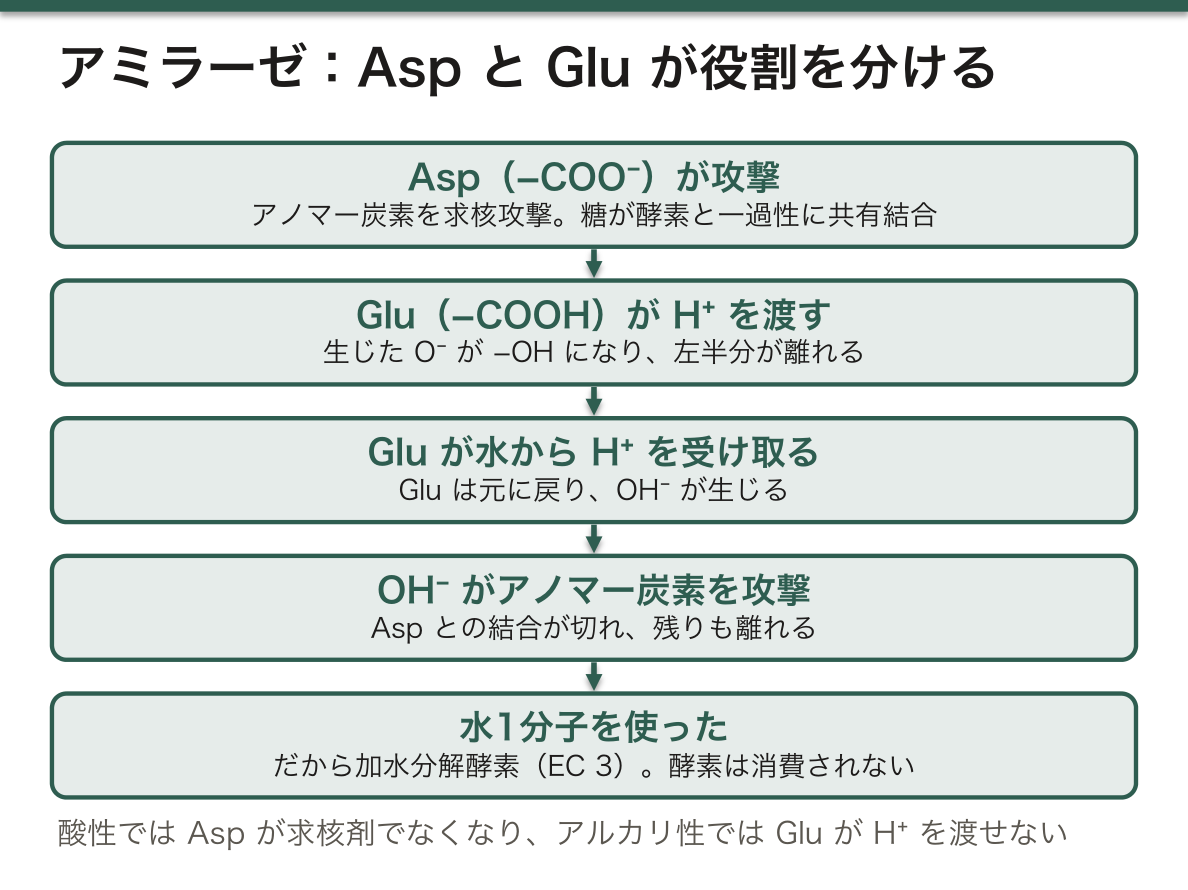
基質の結合そのものは弱い相互作用で起きている——水素結合(糖の −OH と側鎖)、イオン相互作用(カルボキシラートと分極した炭素)、そしてファンデルワールス力などその他の弱い力。共有結合ができるのは触媒の途中だけで、しかも一過性である。この「弱い結合で掴み、一瞬だけ共有結合する」という組み合わせが、ほとんどの酵素に共通する働き方である。
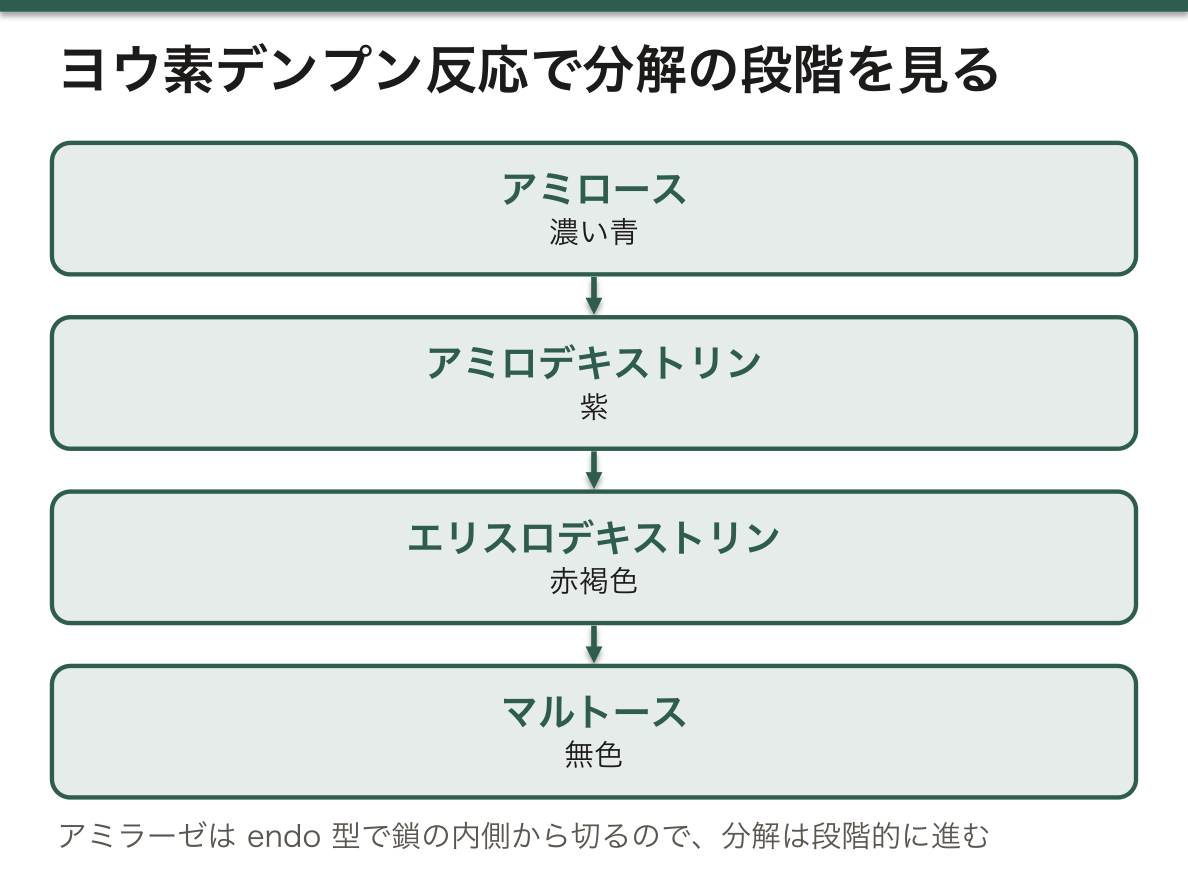
⚠️ アミラーゼは endo-ヒドロラーゼなので鎖の内側から切る。だから分解は段階的に進み、生成物はデキストリン・マルトース・マルトトリオースになる。α(1→6) の分岐は切れない——これには別の脱分枝酵素が要る。
ヨウ素デンプン反応はこの段階を色で見せている:長いアミロース=濃い青 → アミロデキストリン=紫 → エリスロデキストリン=赤褐色 → マルトースまで分解=無色。色が薄いほど酵素が働いたということになる。
唾液アミラーゼの至適 pH は約 6.8 で、これは唾液そのものの pH と一致する。
なぜ酸性でもアルカリ性でも止まるのかは、この機構から直接出てくる——酸性に振ればアスパラギン酸に H⁺ が付いて求核剤でなくなり、アルカリ性に振ればグルタミン酸が H⁺ を失って渡せなくなる。至適 pH とは、この2つが同時に成立する狭い範囲のことである。⚠️ 「変性するから」だけでは説明として半分で、変性より先に触媒残基のプロトン化が壊れている。
胃に入ると唾液アミラーゼは止まる(胃液 pH 1.5〜2)。デンプンの消化は膵アミラーゼが小腸で引き継ぐ(十二指腸は重炭酸で中和されて pH 8 前後)。消化酵素の至適 pH が、その酵素が働く場所とぴったり対応しているのは偶然ではない。
温度と pH — 非特異的な調節
温度と pH は「非特異的」な調節因子である——特定の酵素を狙うのではなく、すべてのタンパク質の形を保つ弱い相互作用と、すべてのイオン化しうる側鎖の電荷に効く。
温度:ヒトの酵素の至適は約 37 ℃。
- 至適より下 — 分子の運動エネルギーが足りず、衝突が減る。変性はしていないので可逆。温めれば活性は戻る
- 至適より上(およそ 40〜42 ℃ 超) — 立体構造を保つ水素結合・イオン結合・疎水性相互作用が壊れ、変性する。これは不可逆で、冷やしても戻らない
pH:至適はその酵素が働く場所と一致する。ペプシン 1.5〜2(胃)/唾液アミラーゼ 約 6.8/トリプシン・キモトリプシン 約 8(十二指腸)/リソソームのカテプシン 約 5/アルカリホスファターゼ 9〜10。
「可逆か不可逆か」が、温度と pH を理解する軸になる。
- 冷却は可逆 — 構造は無傷で、動きが遅いだけ。食品を冷蔵保存できるのはこのためであり、同時に、温めれば腐敗が再開する理由でもある
- 加熱は不可逆 — 変性したタンパク質は自発的には元の形に折り畳まれない
- pH は二段構え — まず触媒残基のプロトン化が狂って触媒が止まり、さらに極端になると塩橋が切れて変性する。軽度なら中性に戻せば活性も戻るが、極端なら戻らない
酸が肉を柔らかくするのも同じ原理である——レモン汁の pH 2〜3 が Asp・Glu 側鎖の −COO⁻ をプロトン化し、塩橋と水素結合を壊してアクトミオシンとコラーゲンを部分的にほどく。同時に肉自身のカテプシン(至適 pH 4〜5 の酸性プロテアーゼ)を働かせる。⚠️ これは加熱調理ではなく変性である。
発熱は、この温度依存性を体が意図的に利用している現象である。
外因性発熱物質(細菌のリポ多糖など)が白血球に内因性発熱物質(IL-1・IL-6・TNF-α・インターフェロン)を出させ、視床下部の視索前野で PGE₂ がセットポイントを上げる。そこへ向けてふるえと血管収縮で体温が上がる。
- 利点 — 免疫反応の酵素反応が速くなり(白血球の遊走・貪食・抗体とインターフェロンの産生)、多くの病原体の酵素にとっては至適を超える。加えて遊離鉄・亜鉛が下がるので増殖しにくい
- 危険 — 41〜42 ℃ を超えると自分の酵素が変性し始める。熱中症・悪性高熱症・悪性症候群で致死的になるのはこのため
NSAIDs が解熱するのは、COX を阻害して PGE₂ を減らし、セットポイントを下げ戻すからであって、体を冷やしているからではない。
まとめ
| 7つのクラス — 反応式のどこを見るか | 国際生化学連合が1961年に定めた分類。 |
|---|---|
| 補因子・補酵素・補欠分子族 — 3語の切り分け | いずれも酵素が活性を持つために要るタンパク質以外の部分だが、分ける基準が途中で変わるので混乱しやすい。 |
| 系統名の読み方と、反応の型から補酵素を当てる表 | 酵素には慣用名(乳酸脱水素酵素)と系統名がある。 |
| 特異性 — 絶対・相対・立体、そして exo と endo | 酵素がどこまで基質を選ぶかには段階がある。 |
| アミラーゼの機構 — 2つの残基が役割を分ける | 基質はデンプン(アミロース)で、切るのは α(1→4) グリコシド結合。 |
| 温度と pH — 非特異的な調節 | 温度と pH は「非特異的」な調節因子である——特定の酵素を狙うのではなく、すべてのタンパク質の形を保つ弱い相互作用と、すべてのイオン化しうる側鎖の電荷に効く。 |
このノートは医学生が授業の内容を自分の言葉でまとめたもので、診療の判断に使うものではありません。誤りに気づいたらお知らせください。